| fluorescenční pigment | - | |
| Inkluze PHB | + | |
| oxidačně fermentační test | O+/F- | |
| kataláza | + | |
| oxidáza podle Kovacse | + | |
| redukce dusičnanů | + | |
| využití citrátů | + | |
| růst při 40°C | - | |
| růst v 1% NaCl | + | |
| růst v 2% NaCl | - | |
| arginin-dihydroláza | - | |
| ztekucení želatiny | - | |
| hydrolýza škrobu | - | |
| hydrolýza eskulinu | - | |
| produkce levanu | - |
ODDÍL II: Diagnóza původce hnědé hniloby
- 1. Příznaky
- 1.1. Příznaky napadení bramboru hnědou hnilobou
- 1.1.1. Příznaky na listech a stoncích
Prvním příznakem onemocnění u brambor je mírné vadnutí horních listů během nejteplejších denních hodin. Zprvu je vadnutí vratné (v noci většinou pomine). Na příčném řezu stonku nízko nad zemí (cca 2,5 cm) jsou cévní svazky hnědě zbarvené. Velmi často se na řezu vylučuje šedobílý, slizovitý až vláknitý exsudát, aniž by bylo nutné stonek stisknout. Při ponoření rozříznutého stonku do vody ve svislé poloze samovolně vytékají z cévních svazků slizová vlákna.
- 1.1.2. Příznaky na hlízách
Na příčném řezu pupkovou částí hlízy se v rané fázi infekce projevuje sklovitě žlutou až světle hnědou barvou prstence cévních svazků, ze kterého po několika minutách buď samovolně nebo po lehkém stisknutí hlízy v blízkosti řezné plochy vytéká bledý, krémově zbarvený slizovitý exsudát. Později je zbarvení cévních svazků výrazně hnědé a nekróza se může rozšířit do parenchymatického pletiva. V pokročilém stádiu se infekce šíří od pupkové části hlíz a z oček, což vede ke vzniku červenavě hnědých lehce vmáčknutých lézí na slupce. Z nich může vytékat bakteriální sliz, na nějž se nalepují půdní částice.
- 1.1.1. Příznaky na listech a stoncích
- 1.2. Příznaky napadení rajčete hnědou hnilobou
Prvním příznakem na rostlině je povadlý vzhled nejmladších listů. Za podmínek příznivých pro patogena (teplota půdy asi 25 °C při nasycené vzdušné vlhkosti) je jedna strana rostliny nebo celá rostlina během několika dnů postižena epinastií a vadnutím, což vede k úplnému odumření rostliny. Za méně příznivých podmínek (teplota půdy pod 21 °C) se na stonku může tvořit velké množství postranních výhonů. Na stonku je možno pozorovat slizovitý pás, což je viditelným znakem nekrózy vodivých pletiv. Na příčném řezu stonku je hnědě zbarvené vodivé pletivo, z něhož vytékají kapky bílého nebo žlutavého bakteriálního slizu.
- 1.1. Příznaky napadení bramboru hnědou hnilobou
- 2. Rychlé screeningové testy
- Rychlé screeningové testy umožňují předběžně stanovit diagnózu. Je třeba provést jeden nebo více z následujících testů:
- Vytékání bakteriálního slizu z cévních svazků
- V případě podezření na hnědou hnilobu lze předběžně stanovit diagnózu i v terénu zjištěním přítomnosti patogena v cévních svazcích stonku rostliny bramboru nebo rajčete: Odřízneme stonek nízko nad zemí a řeznou plochu vložíme do sklenice s vodou. Krátce poté začnou z cévních svazků samovolně vytékat vlákna bakteriálního slizu. Tento příznak nezpůsobuje žádná jiná bakterie napadající brambor a rajče.
- Detekce granulí poly-β-hydroxybutyrátu (PHB)
- Granule PHB v buňkách původce hnědé hniloby jsou nejprve zviditelněny obarvením nilskou modří A nebo sudánskou černí B.
- Poté připravíme buď roztěr slizovitého exkretu nebo suspendovaného pletiva na podložním sklíčku nebo roztěr ze 48hodinové kultury na živné půdě YPGA nebo SPA (Dodatek 1). Připravíme pozitivní kontrolní roztěry kmene biovaru 2/rasa 3 a v případě potřeby i negativní kontrolní roztěr heterologního kmene. Necháme vyschnout. Spodní stranu podložního sklíčka několikrát rychle protáhneme přes plamen, dokud není roztěr fixován.
- Vytékání bakteriálního slizu z cévních svazků
- Test nilskou modří
- 1. Fixovaný roztěr přelijeme 1 % vodním roztokem nilské modři. Inkubujeme 10 minut při teplotě 55°C.
- 2. Barvící roztok se nechá odtéct. Krátce opláchneme pod tekoucí vodovodní vodou. Zbylou vodu vysajeme savým papírem.
- 3. Roztěr přelijeme 8% vodním roztokem kyseliny octové. Inkubujeme 1 minutu při pokojové teplotě.
- 4. Opláchneme pod slabě tekoucí vodou z vodovodu. Osušíme savým papírem.
- 5. Znovu navlhčíme kapkou vody. Přikryjeme krycím sklíčkem.
- 6. Pozorujeme obarvený roztěr jako preparát v epifluorescenčním mikroskopu při vlnové délce 450 nm pod olejovou imersí při zvětšení 1:1 000.
Pozorně sledujeme přítomnost sytě oranžově zbarvených zrn PHB. Pozorování provádíme i při normálním světle, abychom se ujistili, že granule jsou vnitrobuněčné a morfologie buňky je typická pro původce hnědé hniloby.
- Test sudánskou černí
- 1. Fixovaný roztěr přelijeme 0,3% roztokem sudánské černě B v 70% etanolu. Inkubujeme 10 minut při pokojové teplotě.
- 2. Necháme roztok barviva odtéci. Krátce oplachujeme vodou z vodovodu. Přebytečnou vodu vysušíme savým papírem.
- 3. Roztěr nakrátko ponoříme do xylolu. Po vytažení opět osušíme savým papírem. Pozor! Xylol je zdraví škodlivá látka. Nutno pracovat v digestoři!
- 4. Roztěr přelijeme 0,5% (hmotnost/objem) vodním roztokem safraninu a necháme jej 10 sekund stát při pokojové teplotě. Pozor! Safranin je zdraví škodlivá látka. Nutno pracovat v digestoři!
- 5. Opláchneme pod slabě tekoucí vodou z vodovodu. Osušíme savým papírem. Přiložíme krycí sklíčko.
- 6. Obarvený roztěr pozorujeme jako preparát v mikroskopu s procházejícím světlem pod olejovou imersí a při zvětšení 1:1 000. Granule PHB v buňkách původce hnědé hniloby jsou modro-černě zbarvené. Buněčné stěny mají barvu růžovou.
- Jiné testy
- Z dalších testů je vhodný IFtest (oddíl III.2), ELISA-test (oddíl III.3) a PCRtest (oddíl III.4).
- Rychlé screeningové testy umožňují předběžně stanovit diagnózu. Je třeba provést jeden nebo více z následujících testů:
- 3. Postup při izolaci
- 3.1. Odebereme slizovitý exkret nebo části pletiva se změněnou barvou z prstence cévních svazků bramborové hlízy nebo z vodivých pletiv ve stonku rostliny bramboru nebo rajčete.
Suspendujeme v malém objemu sterilní destilované vody nebo v 50 mM fosfátovém pufru a necháme 5 až 10 minut stát.
- 3.2. Připravíme minimálně dvě desetinná ředění suspenze (1/10 a 1/100), v případě potřeby i více těchto ředění.
- 3.3. Převedeme standardní objem suspense a jednotlivých ředění na universální živné médium NA, YPGA a SPA (Dodatek 1) a/nebo na Kelmanovo tetrazoliové médium (Dodatek 1) a nebo na selektivní SMSAmédium (Dodatek 7). Potom je vhodnou metodou rozetřeme na plotny. Může být užitečné připravit samostatné plotny každého media se zředěnou kulturou buněčné suspenze virulentního kmene biovar 2/rasa 3 původce hnědé hniloby jako pozitivní kontrolu.
- 3.4. Plotny necháme při teplotě 28 °C po dobu 3 dnů inkubovat. Při pomalém růstu lze inkubovat až 6 dnů, přičemž se však kolonie bakterií na médiu SMSA často stávají atypickými a odumírají.
Na universálních živných substrátech vytvářejí virulentní izoláty původce hnědé hniloby perlově bílé, ploché, nepravidelné a fluidní kolonie, často s charakteristickými spirálkami.
Na Kelmanově tetrazoliovém médiu vytvářejí virulentní izoláty původce hnědé hniloby typické, krémově zbarvené, ploché, nepravidelné fluidní kolonie s krvavě červeně zabarvenými spirálkami uprostřed. Nevirulentní formy původce hnědé hniloby naproti tomu vytvářejí máslovité, tmavočervené kolonie.
Na SMSA-médiu vytvářejí virulentní izoláty původce hnědé hniloby mléčné bílé, ploché, nepravidelné a fluidní kolonie s krvavě červeně zabarveným středem.
Nevirulentní formy původce hnědé hniloby vytvářejí na SMSA médiu kolonie méně fluidní, které jsou celé růžové až červené.
- 3.5. Kolonie s charakteristickou morfologií převedeme do čisté kultury subkultivací na některém universálním médiu. Je třeba se vyhnout pravidelnému přeočkovávání, které může vést ke ztrátě virulence.
- 3.1. Odebereme slizovitý exkret nebo části pletiva se změněnou barvou z prstence cévních svazků bramborové hlízy nebo z vodivých pletiv ve stonku rostliny bramboru nebo rajčete.
- 4. Potvrzovací test(y)
- 4.1. Identifikace původce hnědé hniloby
Čisté kultury původce hnědé hniloby identifikujeme minimálně jedním z následujících postupů:
Výživové a enzymatické testy
Upozornění: Do každého testu je nutno zahrnout vhodné kontrolní kmeny.
- Následující fenotypové vlastnosti původce hnědé hniloby jsou buď vždy přítomny nebo chybí:
Média a metody viz Lelliot & Stead (1987).
- IF test
- Připravíme suspenzi o hustotě 106 buněk na jeden ml z testované kultury a kontrolního kmene (kontrolních kmenů). Připravíme řadu dvojnásobných zředění antiséra. Použijeme IF metodu (oddíl III.2). IF titr kultury musí odpovídat IF titru pozitivní kontroly.
- ELISA test
- Připravíme suspenzi o hustotě 106 buněk na jeden ml z testovací kultury a kontrolního kmene (kontrolních kmenů). Použijeme metodu ELISA (oddíl III.3). Extinkční hodnota kultury musí odpovídat extinkční hodnotě pozitivní kontroly
- PCR test
- Připravíme suspenzi o hustotě 106 buněk na jeden ml z kultury a kontrolního kmene (kontrolních kmenů). Použijeme metodu PCR (oddíl III.4). PCR produkt kultury musí mít stejnou velikost a stejný vzor restrikční analýzy enzymů (REA vzor) jako má produkt pozitivní kontroly.
- Fluorescenční hybridizace in situ (FISH)
- Připravíme suspenzi o hustotě 106 buněk na jeden ml z kultury a kontrolního kmene (kontrolních kmenů). Použijeme metodu FISH (van Beuningen et al., 1995) s PCR primerem OLI-1 (Seal et al., 1993). Kultura musí vykazovat stejnou reakci jako pozitivní kontrola.
- Analýza proteinů
- Denaturované proteiny celých buněk jsou rozděleny polyakrylamidovou-G-elektroforézou (PAGE) (Stead, 1992a).
- Analýza mastných kyselin
- Kulturu a pozitivní kontrolu necháme růst 48 hodin při teplotě 28 °C na tryptikázo-sójovém agaru a použijeme metodu FAP (Jasen 1991; Stead 1992a, Stead 1992b). Profil kultury musí být shodný s profilem pozitivní kontroly. Charakteristické mastné kyseliny za daných podmínek jsou 14:0 3OH, 16:0 2OH, 16:1 2 OH a 18:1 2OH.
- Následující fenotypové vlastnosti původce hnědé hniloby jsou buď vždy přítomny nebo chybí:
- 3.2. Charakteristika kmenů
- Charakteristika kmene není povinná, avšak doporučuje se ji provádět pro každý nový případ při použití nejméně jednoho z následujících testů:
- Určení biovaru
- Ralstonia solanacearum je členěna na biovary podle schopnosti vytvářet kyseliny ze tří alkoholů a tří cukrů (Hayward 1964, 1994);
biovar 1 2 3 4 5 Využití: - maltózy - + + - + - laktózy - + + - + - celobiózy - + + - + - mannitu - - + + + - sorbitu - - + + - - dulcitu - - + + -
- Ralstonia solanacearum je členěna na biovary podle schopnosti vytvářet kyseliny ze tří alkoholů a tří cukrů (Hayward 1964, 1994);
- Dalšími testy lze biovar 2 členit na subfenotypy (Hayward 1994):
biovar 2 biovar 2-A biovar 2-T Využití: - + + - trehalózy - inositolu + - + - D-ribózy - - + pektinolytická aktivita nízká nízká vysoká
- Determinace ras
- Určení rasy (Buddenhagen et al., 1962) se provádí na základě testů patogenity na rostlinách rajčete nebo lilku vejcoplodého a na rostlinách tabáku a také testem na hypersensitivní reakcí (HR) na listech tabáku (Lozano et Sequeira, 1970):
reakce u: rasa (*) 1 2 3 - rostlin rajčete nebo lilku vejcoplodého vadnutí žádná reakce vadnutí - rostlin tabáku vadnutí žádná reakce žádná reakce - listů tabáku nekróza (48 hod) a vadnutí (7-8 dnů) HR (12 - 24 hod) chloróza (2-8 dnů) - (*) Rasa 4 (patogenní na zázvorovníku a některých dalších hostitelích) a rasa 5 (patogenní pouze na moruši) není v tabulce zahrnuta.
- Určení biovaru
Určení rasy testem patogenity nebo testem hypersenzitivní reakce tabáku nemusí být příliš spolehlivé a místo toho lze na příslušnost k rase usuzovat podle biovaru a původního hostitele.
- Kulturu lze dále charakterizovat pomocí:
- genomového fingerprintu:
Molekul ární odlišení kmenů komplexu Ralstonia solanacearum lze provádět:
- analýzou RFLP (Cook et al., 1989)
- repetitivní sekvencí PCR (REP-, ERIC & BOX-PCR (Louws et al., 1995; Smith et al., 1995).
- genomového fingerprintu:
- Charakteristika kmene není povinná, avšak doporučuje se ji provádět pro každý nový případ při použití nejméně jednoho z následujících testů:
- 4.1. Identifikace původce hnědé hniloby
- 3.3. Test patogenity
Tento test slouží k potvrzení diagnózy původce hnědé hniloby a k potvrzení virulence kultur identifikovaných jako původce hnědé hniloby.
Z kultury a pozitivního kontrolního kmene připravíme inokulum o hustotě 106 buněk na jeden mililitr. Poté inokulujeme 5 - 10 rostlin rajčete nebo lilku vejcoplodého nejlépe ve stadiu třetího listu nebo stadiu starším (oddíl III.6). Inkubujeme až dva týdny při teplotách 22 - 28 °C a vysoké relativní vzdušné vlhkosti a denně zavlažujeme. Dáváme pozor na výskyt vadnutí a nebo epinastie, chlorózy, krnění.
Z rostlin vykazujících charakteristické příznaky provedeme izolaci takto:
- ‒ Odebereme část pletiva ze stonku 2 cm nad místem inokulace.
- ‒ Rozmělníme a suspendujeme v malém množství sterilní destilované vody nebo ve fosfátovém pufru 50mM, pak rozetřeme na plotny, inkubujeme a poté vyhodnotíme na výskyt typických kolonií hnědé hniloby.
ODDÍL III: Detekce a identifikace původce hnědé hniloby ve vzorcích hlíz bramboru
Upozornění: Standardní velikost vzorku je 200 hlíz. Postup je však vhodný i pro vzorky s méně než 200 hlízami.
- 1. Příprava vzorku pro testování
Upozornění: Peletu bramborového extraktu získanou tímto postupem lze použít i pro detekci původce kroužkovitosti.
- Pokud to bude považováno za účelné, je možné před testováním:
- - nechat vzorek inkubovat po dobu až 2 týdnů při teplotě 25 - 30°C, aby se podpořilo rozmnožení slabých populací původce hnědé hniloby;
- - oprat hlízy pod tekoucí vodou s vhodným dezinfekčním a čisticím prostředkem. Hlízy pak nechat na vzduchu oschnout.
- 1.1. Čistým a dezinfikovaným řezným nástrojem odstraníme slupku hlízy na její pupkové části, tak aby bylo vidět vodivá pletiva. Z vodivých pletiv na pupkovém části každé hlízy opatrně vyřízneme malý kónický výkrojek (3 - 5 mm v průměru). Přitom je třeba dbát na to, aby současně bylo vyříznuto co nejméně nevodivých pletiv. Toto provedeme na každé hlíze ve vzorku.
Upozornění: V této fází můžeme hlízy důkladně vizuálně prohlédnout. Hlízy vykazující příznaky nebo silnou hnilobu je třeba vyřadit a zkoumat odděleně (oddíl II).
- 1.2 Pupkové části hlíz dáme do uzavřené nádoby a neprodleně zpracujeme. Pokud to není možné, neměly by být skladovány déle než 24 hodin nebo při teplotě 4 °C déle než 72 hodin.
- 1.3 Pupkové části hlíz zpracujeme jedním z následujících postupů:
- 1.3.1. Pupkové části hlíz vložíme do vhodné nádoby.
Přidáme dostatečný objem maceračního pufru (Dodatek 2), aby došlo k přikrytí pupkových části hlíz.
Kousky rozmělníme až do úplné homogenizace v mixeru Waring Blender nebo Ultra-Turrax. Je však třeba zamezit příliš silné homogenizaci.
Macerát necháme 15 - 30 minut máčet. - 1.3.2. Pupkové části hlíz vložíme do vhodné nádoby.
Přidáme dostatečný objem maceračního pufru, aby došlo k překrytí pupkových částí hlíz.
Nádobu dáme do rotační třepačky.
Udržujeme při 50 - 100 otáčkách za minutu po dobu 4 hodin při teplotě 20 - 22 °C nebo po dobu 16 - 24 hodin při teplotě 4 °C. - 1.3.3. Pupkové části hlíz vložíme do pevného jednorázového maceračního sáčku (např. sáček Stomacher, rozměry 105 x 150 mm, sterilizován ozářením).
Pupkové části hlíz rozmělníme vhodným nástrojem, např. kladivem, až k úplné homogenizaci.
Přidáme dostatečné množství maceračního pufru, aby došlo k překrytí rozmělněných pupkových částí hlíz.
Macerát necháme 15-30 minut odstát.
- 1.3.1. Pupkové části hlíz vložíme do vhodné nádoby.
- 1.4. Z takto zpracovaných pupkových částí hlíz se bakterie extrahují některým z následujících postupů:
- 1.4.1. Macerát opatrně nalijeme do centrifugační zkumavky, tuhý zbytek přitom ponecháme v nádobě nebo sáčku. Je-li slitý macerát kalný, odstřeďujeme při teplotě pod 10 °C po dobu 10 minut při odstředivé síle ne větší než 180 g.
Slitý macerát či supernatant z prvního odstřeďování odstřeďujeme po dobu 15 minut při 7 000 g nebo 10 minut při 10 000 g při teplotě pod 10 °C.
Supernatant vylijeme tak, abychom neporušili vzniklou peletu.
- 1.4.2. Macerát přefiltrujeme přes filtrační systém s velikostí pórů 40 - 100 μm. Filtraci posílíme vakuovým čerpadlem.
Filtrát shromáždíme v centrifugační zkumavce.
Filtr promyjeme maceračním pufrem.
Filtrát odstřeďujeme po dobu 15 minut při 7 000 g nebo 10 minut při 10 000 g a při teplotě pod 10°C.
Supernatant vylijeme tak, abychom neporušili vzniklou peletu.
- 1.4.1. Macerát opatrně nalijeme do centrifugační zkumavky, tuhý zbytek přitom ponecháme v nádobě nebo sáčku. Je-li slitý macerát kalný, odstřeďujeme při teplotě pod 10 °C po dobu 10 minut při odstředivé síle ne větší než 180 g.
- 1.5. Peletu resuspendujeme v 1 ml peletového pufru (Dodatek 2).
Rozdělíme na dva stejné díly a každý z nich nalijeme do jedné mikrozkumavky.
Pro test používáme jen jednu mikrozkumavku. Zbytek tohoto extraktu skladujeme po dobu testu při teplotě 4 °C.
Do druhé mikrozkumavky přilijeme 10-25 objemových procent sterilního glycerinu.
Protřepeme. Skladujeme při teplotě - 18 °C (týdny) nebo při teplotě - 70 °C (měsíce).
- Pokud to bude považováno za účelné, je možné před testováním:
- 2. IF test
Použijeme antisérum pro původce hnědé hniloby, nejlépe pro rasu 3/biovar 2. Určíme titr u suspenze o hustotě 106 buněk na mililitr homologního kmene hnědé hniloby s vhodným zředěním konjugátu fluorescenčního isothiokyanátu (FITC) podle doporučení výrobce. Surové antisérum by mělo mít IF titr minimálně 1 : 2 000.
Použijeme víceokénkové podložní sklíčko nejlépe s 10 okénky o průměru nejméně 6 mm.
Na každé podložní sklíčko naneseme kontrolu konjugátu FITC. Test by měl být opakován s kontrolou PBS, pokud kontrola FITC vykáže nějakou pozitivní buňku.
Odděleně připravíme pozitivní kontrolní podložní sklíčka se suspenzí o hustotě 106 buněk na mililitr některého kmene příslušné rasy a biovaru hnědé hniloby. V každé sérii testování použijeme jedno podložní sklíčko.
- 2.1. Podložní sklíčka připravíme jedním z následujících postupů:
- 2.1.1. Pro pelety s relativně malým obsahem škrobu:
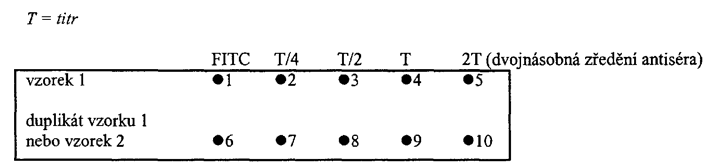
Odměřený standardní objem (15 μl postačuje pro okénko o průměru 6 mm - u větších okének je nutno použít odpovídající větší objem resuspendované pelety) naneseme pipetou na řadu okének. Další řada může být použita jako duplikát nebo pro druhý vzorek, jak je znázorněno na obr. 1. - 2.1.2. Pro jiné pelety:
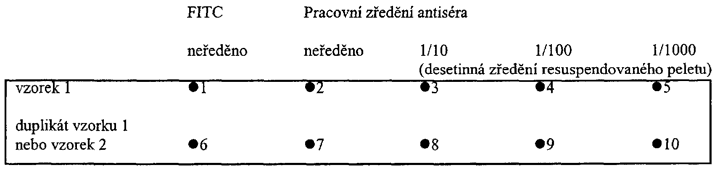
Připravíme desetinná ředění, tzn. 1/10, 1/100 a 1/1 000 resuspendované pelety v peletovém pufru. Odměřený standardní objem (15 μl postačuje pro okénko o průměru 6 mm - u větších okének je nutno použít odpovídající větší objem) resuspendované pelety a každého ředění naneseme pipetou na řadu okének. Zbývající řada může být použita jako duplikát nebo pro druhý vzorek, jak je znázorněno na obr. 2.
- 2.1.1. Pro pelety s relativně malým obsahem škrobu:
- 2.2. Kapky necháme vyschnout. Bakteriální buňky fixujeme na podložním sklíčku buď zahřátím, ožehnutím nebo 95% etanolem.
- 2.3. Postup při IF testu
- 2.3.1. Při přípravě podložního sklíčka podle 2.1.1.:
Připravíme sadu dvojnásobných zředění antiséra v IFpufru (Dodatek 3):
1/4 titru (T/4), 1/2 titru (T/2), titr (T) a dvojnásobek titru (2T) - 2.3.2. Při přípravě podložního sklíčka podle 2.1.2.:
Připravíme pracovní ředění antiséra v IFpufru. Pracovní ředění je ředění antiséra s optimální specifičností a obvykle má polovinu hodnoty titru.- Obrázek 1
- Příprava podložního sklíčka postupem podle 2.1.1. a 2.3.1.
- Standardní ředění resuspendované pelety
- Obrázek 2
- Příprava podložního sklíčka postupem podle 2.1.2. a 2.3.2.
- Obrázek 1
- 2.3.1. Při přípravě podložního sklíčka podle 2.1.1.:
- 2.3.3. Podložní sklíčka vyložíme na vlhký savý papír.
Všechna testovací okénka pokryjeme ředěním(i) antiséra. Na okénka FITC naneseme fosfátový pufr PBS. Objem antiséra nanášený na okénka musí odpovídat objemu naneseného extraktu.
- 2.3.4. Inkubujeme zakryté po dobu 30 minut při pokojové teplotě.
- 2.3.5. Kapky antiséra setřeseme z podložního sklíčka a podložní sklíčka opatrně opláchneme IFpufrem. Omýváme 5 minut v roztoku IF pufruTween a poté 5 minut v IF pufru. (Dodatek 3).
Přebytečnou vlhkost pečlivě odstraníme.
- 2.3.6. Podložní sklíčka vyložíme na vlhký savý papír.
Testovací okénka a okénko s FITC pokryjeme ředěním konjugátu FITC použitým pro stanovení titru. Objem konjugátu nanášený na okénka musí odpovídat objemu aplikovaného antiséra.
- 2.3.7. Inkubujeme zakryté po dobu 30 minut při pokojové teplotě.
- 2.3.8. Kapky konjugátu setřeme z podložního sklíčka. Opláchneme a omýváme stejně jako v bodě 2.3.5. Přebytečnou vlhkost pečlivě odstraníme.
- 2.3.9. Na každé okénko napipetujeme 5 - 10 μl 0,1 M glycerolu pufrovaného fosfátem (Dodatek 3) nebo jinou podobnou krycí kapalinu a přiložíme krycí sklíčko.
- 2.1. Podložní sklíčka připravíme jedním z následujících postupů:
- 2.4. Hodnocení IF testu
Podložní sklíčka prohlížíme pod epifluorescenčním mikroskopem s filtry vhodnými pro excitaci FITC, pod olejovou imersí při zvětšení 500 - 1 000 x. Každé okénko mikroskopicky prohlížíme ve dvou navzájem kolmých průměrech a rovněž po obvodu.
Nejprve prohlížíme podložní sklíčka s pozitivní kontrolou. Buňky musí jasně fluoreskovat a být plně zbarveny. Upozornění: Při odchylném zbarvení je třeba test opakovat.
Poté prohlížíme podložní sklíčka s testovanými vzorky. Nejprve prohlížíme preparáty z hlediska absence fluoreskujících buněk v okénkách s kontrolou FITC. Fluoreskující buňky v kontrolním okénku FITC ukazují na nespecifickou vazbu konjugátu, na autofluorescenci nebo na kontaminaci. Upozornění: Pokud toto pozorujeme, je třeba test opakovat.
V testovacích okénkách pozorujeme jasně fluoreskující buňky s charakteristickou morfologií původce hnědé hniloby. Intenzita fluorescence musí odpovídat pozitivnímu kontrolnímu kmenu při stejném ředění antiséra. Na buňky s neúplným zabarvením nebo se slabou fluorescencí nebereme ohled, ledaže by bylo takových buněk přítomno velmi mnoho (viz vyhodnocení výsledku IF testu).
- 2.4.1. Vyhodnocení výsledku IF testu
- a) Nejsou-li nalezeny silně fluoreskující buňky s charakteristickou morfologií, je IF test negativní.
- b) Jsou-li nalezeny jasně fluoreskující buňky s charakteristickou morfologií, určíme průměrný počet buněk na mikroskopické pole a vypočteme počet buněk na jeden mililitr (hodnota N) resuspendované pelety (Dodatek 4).
- Hustota bakterií v hodnotě asi 103 buněk na jeden mililitr resuspendované pelety je považována za hranici detekce IF-testu,
- – u vzorků s N > 103 buněk na 1 ml resuspendované pelety se výsledek IF testu hodnotí jako pozitivní,
- – u vzorků s N < 103 buněk na 1 ml resuspendované pelety může být výsledek IF testu hodnocen jako pozitivní
- Hustota bakterií v hodnotě asi 103 buněk na jeden mililitr resuspendované pelety je považována za hranici detekce IF-testu,
- c) Je-li zjištěn vysoký počet (> 105 buněk na 1 mililitr) neúplně nebo slabě fluoreskujících buněk při titru antiséra, měl by být proveden druhý test:
- – buď test založený na odlišném biologickém principu nebo
- – opakovaný IF test, buď s druhým antisérem nebo s desetinásobným zředěním pelety.
- 2.4.1. Vyhodnocení výsledku IF testu
- 3. ELISA test
(podle Robinsona-Smitha et al., 1995)
Použijeme antisérum pro původce hnědé hniloby, nejlépe pro rasu 3/biovar 2. Titr stanovujeme u suspenze o hustotě 106 na 1 ml buněk homologního kmene původce hnědé hniloby.
Doporučuje se používat mikrotitrační destičky NUNC-Polysorb.
Do testu zahrneme negativní kontrolu bramborového extraktu a kontrolu fosfátového pufru (PBS).
Jako pozitivní kontrolu použijeme suspenzi o hustotě > 106 buněk na 1 ml z kmene vhodné rasy/biovaru původce hnědé hniloby.Test provádíme stejně jako u vzorku, avšak odděleně od vzorků na mikrotitrační destičce.
- 3.1. Odpipetujeme 100 - 200 μl resuspendované pelety do mikrozkumavky.
Po dobu čtyř minut zahříváme při teplotě 100 °C. Mikrozkumavky pak položíme na led. - 3.2. Přidáme stejný objem dvojnásobně silného uhličitanového krycího pufru (Příloha 5). Promícháme.
- 3.3. Do nejméně dvou jamek v mikrotitrační destičce dáme vždy po 100 μl. Po dobu jedné hodiny inkubujeme při teplotě 37 °C nebo přes noc při teplotě 4 °C.
- 3.4. Extrakty z jamek zcela odstraníme. Jamky vymyjeme třikrát fosfátovým pufrem (PBS) s Tweenem (Dodatek 5); poslední mycí roztok by v jamkách měl zůstat alespoň 5 minut.
- 3.5. Připravíme vhodné ředění antiséra původce hnědé hniloby v blokačním (antilátkovém) pufru (Dodatek 5). Do jamek dáme po 100 μl ředěného antiséra.
Inkubujeme po dobu jedné hodiny při teplotě 37 °C.
- 3.6. Antisérum z jamek zcela odstraníme. Jamky vymyjeme stejným způsobem, jak je popsáno výše (3.4.).
- 3.7. Připravíme vhodné ředění konjugátu alkalické fosfatasy v blokačním (antilátkovém) pufru. Do jamek dáme 100 μl ředěného konjugátu.
Inkubujeme po dobu jedné hodiny při teplotě 37 °C. - 3.8. Konjugát z jamek zcela odstraníme. Jamky vymyjeme stejným způsobem, jak je popsáno výše (3.4., 3.6.).
- 3.9. Připravíme substrátový alkalický roztok fosfatasy (Dodatek 5). Dáme 100 μl do jamek. Inkubujeme po dobu mezi 30 minutami a 1 hodinou ve tmě při pokojové teplotě.
- 3.10. Odečteme absorbanci při vlnové délce 409 nm.
- Vyhodnocení výsledku ELISA testu:
- ELISA test je negativní tehdy, je-li optická hustota (OD) vzorku < 2 x OD negativní kontroly.
- ELISA test je pozitivní tehdy, je li optická hustota (OD) vzorku > 2 x OD negativní kontroly.
- Vyhodnocení výsledku ELISA testu:
- 3.1. Odpipetujeme 100 - 200 μl resuspendované pelety do mikrozkumavky.
- 4. PCR test
(podle Seala et al., 1993)Upozornění: U všech kroků přípravy vzorku i všech ostatních činností v souvislosti s PCR musí být používány špičky pipet s filtrem.
Jako pozitivní kontrolu připravíme suspenzi kmene původce hnědé hniloby rasy 3/biovar 2 o hustotě 106 buněk na 1 ml. Test u této kontroly provádíme stejným postupem jako u vzorku(ů).
- 4.1. Odpipetujeme 100 μl resuspendované pelety do mikrozkumavky.
Alternativně lze dát 90 μl resuspendované pelety do mikrozkumavky, která obsahuje 10 μl 0,5M NaOH. Mícháme opakovaným převracením mikrozkumavky.
- 4.2. Zahříváme po dobu 4 minut při teplotě 100 °C. Mikrozkumavku pak ihned přemístíme na led.
- 4.3. Připravíme minimálně dvě desetinná ředění, např. 1/10 a 1/100 (v případě potřeby i více) ve sterilizované destilované vodě nebo ultračisté vodě (UPW).
- 4.4. Ve sterilní mikrozkumavce připravíme reakční směs pro PCR (Dodatek 6) tak, že přidáváme následující složky v tomto pořadí:
- Pro reakční objem 50 μl
složka množství konečná koncentrace sterilní destilovaná voda 30,8μl - 33,8μl nebo UPW 10 x PCR pufr 5,0μl 1 x d-ATP 1,0μl 0,2 mM d-CTP 1,0μl 0,2 mM d-GTP 1,0μl 0,2 mM d-TTP 1,0μl 0,2 mM Primer OLI-1 (20 μM) 2,5μl 1 μm M Primer Y-2(20 μM) 2,5μl 1 μm M Taq-polymeráza (5U/1 μl) 0,2μl 1,0 U Celkový objem 45 μl - 48 μl - Pro více reakcí
- Vypočítáme množství každé složky pro požadovaný počet reakcí.
Složky smícháme a 45 μl - 48 μl směsi dáme do sterilních mikrozkumavek PCR.
Mikrozkumavky s reakční směsí PCR položíme na led.
- Vypočítáme množství každé složky pro požadovaný počet reakcí.
- Pro reakční objem 25 μl:
- Množství složek odpovídajícím způsobem zmenšíme.
- Pro více reakcí
- Pro reakční objem 50 μl
- 4.5. PCR amplifikace
- 4.5.1. Nepovinně: Mikrozkumavky s povařeným vzorkem a pozitivní kontrolou pulzačně (velmi krátce) odstředíme. Do mikrozkumavek s reakční směsí PCR přidáme v uvedeném pořadí 2 - 5 μl vzorku, vodní kontrolu a pozitivní kontrolu. Mikrozkumavky postavíme do ohřívacího bloku termocykleru DNA.
- 4.5.2. Provedeme následující program:
- 1 cyklus
- a) 2 minuty při teplotě 96 °C; denaturace matrice
- 50 cyklů
- b) 20 sekund při teplotě 94 °C; denaturace
- c) 20 sekund při teplotě 68 °C; připojení (anelace) primerů
- d) 30 sekund při teplotě 72 °C; prodlužování primerů
- 1 cyklus
- e) 10 minut při teplotě 72 °C; další prodlužování;
- 1 cyklus
- f) uchováváme při teplotě 4 °C.
Upozornění: Tyto parametry se vztahují na termocykler Perkin Elmer 9600. U jiných termocyklerů je případně nutná vrstva minerálního oleje v reakčních zkumavkách PCR a nebo změna trvání kroku b), c) a d) v amplifikačním profilu.
- 1 cyklus
- 4.5.3. Mikrozkumavky vyjmeme z termocykleru. Analyzujeme PCR produkt. Pokud toto nelze provést ihned, uložíme mikrozkumavky pro použití v tomtéž dni při teplotě 4 °C a pro použití za delší dobu je skladujeme při teplotě - 18 °C.
- 4.6. Analýza PCR produktu
Fragmenty PCR se detekují agarózovou gelovou elektroforézou a obarvením ethidiumbromidem.
- 4.6.1. Připravíme vhodný agarózový gel tak, že agarózu opatrně povaříme v elektroforetickém tris-octanovém pufru (TAE).
- 4.6.2. Roztavenou agarózu ochladíme na teplotu asi 50-60 °C, naplníme jí gelovou nalévací komoru elektroforézní aparatury a nasadíme hřeben. Roztok necháme ztuhnout.
- 4.6.3. Hřeben vyjmeme. Gel ponoříme do pufru TAE tak, aby byl pokryt vrstvou pufru silnou asi 2 - 3 mm.
- 4.6.4. Na Parafilm naneseme kapku nanášecího pufru o objemu 3 μl. Přidáme 12 μl produktu PCR ze vzorků, z pozitivní kontroly nebo vodní kontroly a před naplněním zamícháme jemným odsátím do špičky pipety. Uvedené objemy mohou být upraveny v závislosti na kapacitě jamek v agarózovém gelu.
- 4.6.5. Jamky v gelu pečlivě naplníme. Do nejméně jedné jamky dáme pro porovnání příslušný DNA markér.
- 4.6.6. Zapojíme elektroforetickou aparaturu do sítě. Elektroforézu provádíme při hodnotách 5-8 V/cm, pokud se čelo značeného indikátoru nebude nacházet ve vzdálenosti do 1 cm od okraje gelu.
- 4.6.7. Vypneme přívod proudu do elektroforetické aparatury.
Gel opatrně odstraníme a namáčíme jej po dobu 30 - 45 minut v roztoku ethidiumbromidu.
Upozornění: Při manipulaci s ethidiumbromidem, který je silně mutagenní látkou, používáme vždy jednorázové rukavice! - 4.6.8. Barvivo z gelu vymýváme v destilované vodě po dobu 10 až 15 minut.
- 4.6.9. Zesílený(é) fragment(y) DNA zviditelníme ultrafialovou transiluminací. PCR-produkt hnědé hniloby s primery OLI-1 a Y-2 má délku 288 párů bází. Porovnáme s DNA markérem a s pozitivní kontrolou.
Upozornění: Vodní (=negativní) kontrola musí být v každém případě negativní. Pokud by vycházela jako pozitivní, musí být test opakován.
- 4.6.10. Za účelem dokumentace gel případně vyfotografujeme.
- 4.6.11. Pravost zesíleného fragmentu potvrdíme analýzou restrikčním enzymem (REA).
- 4.7. Analýza restrikčním enzymem (REA)
- 4.7.1. 8,5 μl PCR produktu (4.5.3.) dáme do nové mikrozkumavky. Přidáme 1 μl 10x enzymového pufru a 0,5 μl restrikčního enzymu Ava 11.
- 4.7.2. Mícháme jemným odsáváním do špičky pipety. Pokud na stěnách mikrozkumavky zůstávají kapičky, vzorek pulsním způsobem odstředíme v mikroodstředivce. Inkubujeme asi hodinu při teplotě 37 °C.
- 4.7.3. Digerovaný fragment PCR analyzujeme jako předtím (4.6) agarózovou gelovou elektroforézou.
- Vyhodnocení výsledků PCR testu:
- PCR test je negativní, pokud nebyl prokázán charakteristický fragment 288 bp a tento fragment byl přitom detekován u pozitivního kontrolního kmene hnědé hniloby.
- PCR test je pozitivní, jestliže byl prokázán 288 bp fragment a analýza REA ukazuje, že amplifikovaný fragment je identický s pozitivním kontrolním kmenem hnědé hniloby.
- Vyhodnocení výsledků PCR testu:
- 4.1. Odpipetujeme 100 μl resuspendované pelety do mikrozkumavky.
- 5. Test na selektivním živném médiu
(podle Elphinstona et al. 1996).- 5.1. Test se provádí vhodnou zřeďovací technikou roztěrů, např.:
- a) Připravíme minimálně dvě desetinná ředění, tzn. 1/10 a 1/100 nebo více resuspendované pelety v peletovém pufru. Odměřený standardní objem (50 - 100 μl) resuspendované pelety a každého ředění napipetujeme na modifikované selektivní SMSA médium (Dodatek 7) a skleněnou tyčinkou rozprostřeme po celé ploše média.
- Pokud se to ukáže jako účelné, provedeme 10 μl očkem zřeďovací roztěr resuspendované pelety. Mezi roztěry očko plamenem sterilizujeme.
- b) Odměřený standardní objem (50 - 100 μl) resuspendované pelety naneseme na modifikované selektivní SMSA médium a skleněnou tyčinkou rozetřeme po celé ploše média. Tyčinkou bez ožehnutí plamenem provedeme roztěry na nejméně dvě další plotny s modifikovaným substrátem SMSA.
- a) Připravíme minimálně dvě desetinná ředění, tzn. 1/10 a 1/100 nebo více resuspendované pelety v peletovém pufru. Odměřený standardní objem (50 - 100 μl) resuspendované pelety a každého ředění napipetujeme na modifikované selektivní SMSA médium (Dodatek 7) a skleněnou tyčinkou rozprostřeme po celé ploše média.
- 5.2. Stejnou zřeďovací technikou roztěru naneseme suspenzi virulentního kmene původce hnědé hniloby rasa 3/biovar 2 o hustotě 106 buněk v 1 ml jako pozitivní kontrolu na sadu samostatných ploten s modifikovaným SMSA médiem.
- 5.3. Plotny inkubujeme při teplotě 28 °C. Po 3 dnech provedeme první kontrolu ploten. Při negativním nálezu inkubujeme dále až do 6 dnů. Kolonie virulentních izolátů původce hnědé hniloby jsou mléčně bílé, ploché, nepravidelné a fluidní, jejich střed je rudě zabarvený s proužky nebo spirálkami.
- 5.4. Kolonie s charakteristickou morfologií převedeme přeočkováním do čisté kultury na universálním médiu (Dodatek 1).
- 5.5. Čisté kultury identifikujeme (oddíl II. 4.1) a kultury původce hnědé hniloby potvrdíme testem patogenity (Oddíl II.4.3.).
- Vyhodnocení výsledků testu na selektivním živném médiu.
- Test na selektivním živném médiu je negativní, pokud po šesti dnech nelze izolovat žádné kolonie bakterií nebo pokud nejsou izolovány žádné charakteristické kolonie původce hnědé hniloby, za předpokladu, že není podezření z inhibice koloniemi jiných bakterií a že v pozitivních kontrolách byly zjištěny charakteristické kolonie původce hnědé hniloby.
- Test na selektivním živném médiu je pozitivní, jestliže byly izolovány charakteristické kolonie původce hnědé hniloby.
- Vyhodnocení výsledků testu na selektivním živném médiu.
- 5.1. Test se provádí vhodnou zřeďovací technikou roztěrů, např.:
- 6. Biotest
(podle Janse, 1988)- 6.1. Pro každý vzorek použijeme 10 testovacích rostlin náchylných semenáčků rajčete nebo lilku vejcoplodého se stadiu třetího listu. Testované rostliny po dobu 24 hodin před inokulací nezaléváme.
- 6.2. 100μl resuspendované pelety rozdělíme mezi testované rostliny. Inokulujeme stonek mezi dělohami a na jednom nebo více dalších místech.
- 6.3. Stejnou technikou inokulujeme 10 semenáčků suspenzí virulentního kmene původce hnědé hniloby rasa 3/biovar 2 o hustotě 106 buněk v 1 mililitru jako pozitivní kontrolu a peletovým pufrem jako negativní kontrolu.
Abychom zabránili křížové kontaminaci, oddělíme pozitivní kontrolní rostliny od ostatních. - 6.4. Testované rostliny necháme dále růst při teplotách 22 °C až 28 °C a při vysoké relativní vzdušné vlhkosti až do 4 týdnů. Denně rostliny zaléváme. Pozorujeme příznaky vadnutí, epinastie, chlorózy a (nebo) krnění.
- 6.5. Z infikovaných rostlin provedeme izolaci (oddíl II). Identifikujeme čisté kultury s charakteristickou morfologií (oddíl II. 4.1.) a kultury původce hnědé hniloby potvrdíme testem patogenity (oddíl II.4.3.).
- 6.6. V případě potřeby přezkoumáme u těch testovaných rostlin, jež nevykazují žádné příznaky infekce, zda skutečně k infekci nedošlo. Z každé testované rostliny odebereme 2 cm nad místem naočkování 1 cm dlouhý úsek stonku. Odebrané části pletiv homogenizujeme v maceračním pufru. Provedeme test zřeďovací technikou (oddíl III. 5.1.). V případě pozitivního nálezu identifikujeme čisté kultury s charakteristickou morfologií (oddíl II. 4.1.) a kultury původce hnědé hniloby potvrdíme provedením testu patogenity (oddíl II.4.3.).
- Vyhodnocení výsledku biotestu:
- Biotest je negativní, jestliže testovací rostliny nejsou infikovány původcem hnědé hniloby, za předpokladu, že původce hnědé hniloby byl detekován v pozitivních kontrolách.
- Biotest je pozitivní, jestliže testovací rostliny jsou infikovány původcem hnědé hniloby.
- Vyhodnocení výsledku biotestu:
- 7. Obohacovací testy
(podle J.G. Elphinstona et al., 1996)- 7.1. Vložíme 100 μl resuspendované pelety do 3 ml modifikovaného živného média SMSA (Dodatek 7).
- 7.2. Inkubujeme po dobu 48 hodin, v žádném případě však ne déle než 72 hodin, při teplotě 28 °C, a to při volně nasazeném víčku mikrozkumavky za účelem větrání.
- 7.3. Upevníme víčko mikrozkumavky a protřepeme. Rozdělíme množství pro IFtest (tento oddíl, bod 2), pro ELISA-test (tento oddíl, bod 3) a/nebo PCR-test (tento oddíl, bod 4).
- 8 Test patogenity
Viz oddíl II.4.3.
Živná média pro izolaci a kultivaci původce hnědé hnilobyDodatek 1
- Živný agar (NA)
Živná média pro izolaci a kultivaci původce hnědé hniloby živný agar (Difco) 23 g destilovaná voda 1 l V 1-litrové baňce připravíme 0,5 litru objemu média.
Látky rozpustíme.
Sterilizujeme 15 minut v autoklávu při teplotě 121 °C.
Ochladíme na 50 °C. Provedeme rozliv ploten.
- Kvasnično-pepton-glukózový agar (YPGA)
Živná média pro izolaci a kultivaci původce hnědé hniloby kvasničný extrakt (Difco) 5 g baktopepton (Difco) 5 g D(+)-glukóza (monohydrát) 10 g baktoagar (Difco) 15 g destilovaná voda 1 l V jednolitrové baňce připravujeme 0,5 litru objemu média.
Látky rozpustíme.
Sterilizujeme 15 minut v autoklávu při teplotě 121°C.
Ochladíme na 50 °C. Provedeme rozliv ploten.
- Sacharózo-peptonový agar (SPA)
Živná média pro izolaci a kultivaci původce hnědé hniloby sacharóza 20 g pepton 5 g K2HPO4 0,5 g MgSO4. 7H2O 0,25 g baktoagar (Difco) 15 g destilovaná voda 1 l V jednolitrové baňce připravujeme 0,5 litru objemu média.
Látky rozpustíme. V případě potřeby upravíme pH na 7,2 - 7,4.
Sterilizujeme 15 minut v autoklávu při teplotě 121 °C.
Ochladíme na 50 °C. Provedeme rozliv ploten.
- Kelmanovo tetrazoliové médium
Živná média pro izolaci a kultivaci původce hnědé hniloby kyseliny kasaminové (=kasein hydrolyzát) (Difco) 1 g baktopepton (Difco) 10 g dextróza 5 g baktoagar (Difco) 15 g destilovaná voda 1 l V jednolitrové baňce připravujeme 0,5 litru objemu média.
Látky rozpustíme.
Sterilizujeme 15 minut v autoklávu při teplotě 121 °C.
Ochladíme na 50 °C.
Přidáme filtrem sterilizovaný vodní roztok trifenyl-tetrazoliumchloridu (Sigma) až do dosažení konečné koncentrace 50 mg/l.
Provedeme rozliv ploten.
Dodatek 2
Materiál pro přípravu vzorku
Macerační pufr: 50 mM fosfátový pufr, pH 7,0
Tento pufr se používá pro macerování pletiv.
| Na2HPO4 | 4,26 g | |
| KH2PO4 | 2,72 g | |
| destilovaná voda | 1 l |
Látky rozpustíme a zkontrolujeme pH. Podle potřeby provedeme alikvotaci.
Sterilizujeme v autoklávu po dobu 15 minut při teplotě 121°C.
Při provádění přímého PCR testu se doporučuje přidání 5% polyvinylpyrolidonu 40.000 MWT (PVP-40), aby se snížil rozsah inhibice amplifikace aromatickými molekulami v extraktu.
Při použití homogenizačních metod pomocí Waring-Blender nebo Ultra-Turrax k maceraci výkrojků pletiva bramboru se doporučuje přidání deflokulačního prostředku, prostředku proti tvorbě pěny nebo antioxidantu.
| lubrolové vločky | 0,5 g/l |
| antipěnidlo DC-silikon | 1,0 ml/l |
| tetrapyrofosfát sodný | 1,0 g/l |
Autoklávujeme odděleně. Přidáváme až do dosažení žádané koncentrace.
Peletový pufr: 10 mM fosfátového pufru, pH 7,2
Tento pufr se používá pro resuspendování a ředění pelet a pupkových částí bramborových hlíz
| Na2HPO4. 12 H2O | 2,7 g |
| KH2PO4.2 H2O | 0,4 g |
| destilovaná voda | 1 l |
Látky rozpustíme a zkontrolujeme pH. Podle potřeby provedeme alikvotaci.
Sterilizujeme v autoklávu po dobu 15 minut při teplotě 121 °C.
Dodatek 3
Materiál pro IF test
IF-pufr: 10 mM roztoku chloridu sodného pufrovaného fosfátem (PBS), pH 7,2
Tento pufr se používá pro ředění antiséra.
| Na2HPO4 .12H2O | 2,7 g |
| KH2PO4 . 2 H2O | 0,4 g |
| NaCl | 8,0 g |
| destilovaná voda | 1 l |
Látky rozpustíme a zkontrolujeme pH. Podle potřeby provedeme alikvotaci.
Sterilizujeme v autoklávu po dobu 15 minut při teplotě 121 °C.
IF pufr Tween
Tento pufr se používá k omytí podložních sklíček. K IF pufru se přidává 0,1 % Tween.
0,1 M glycerin pufrovaný fosfátem, pH 7,6
Tento pufr se používá ke zvýšení fluorescence jako krycí tekutina na okénkách IFpodložního sklíčka.
| Na2HPO4 . 12 H2O | 3,2 g |
| NaH2PO4 . 2 H2O | 0,15 g |
| glycerol | 50 ml |
| destilovaná voda | 100 ml |
Stanovení stupně kontaminace v IF testuDodatek 4
Plocha (S) jednoho okénka na podložním sklíčku s více okénky
- přičemž D = průměr okénka (1).
Plocha (s) pole objektivu
- kde d = průměr pole objektivu (2);
- d stanovíme buď přímým měřením nebo z následujících vzorců:
- kde i = koeficient pole (závisí na typu okuláru mikroskopu a může mít hodnotu od 8 do 24),
K = tubusový koeficient (1 nebo 1,25)
G = (100násobné, 40násobné apod.) zvětšení objektivu;
ze vzorce (2):
ze vzorce (3):
Zjistíme počet typických fluoreskujících buněk v jednom poli - c.
Vypočítáme počet typických fluoreskujících buněk v celém okénku - C.
Vypočítáme počet typických fluoreskujících buněk na jeden ml pelety (N).
- kde y = objem pelety na okénku podložního sklíčka
F = zřeďovací faktor pelety.
Dodatek 5
Materiál pro ELISA test
- Dvojnásobný uhličitanový povlakový pufr, pH 9,6
Živná média pro izolaci a kultivaci původce hnědé hniloby Materiál pro přípravu vzorku Stanovení stupně kontaminace v IF testu Materiál pro ELISA test Na2CO3 6,36 g NaHCO3 11,72 g destilovaná voda 1 l Látky rozpustíme a změříme pH. Podle potřeby provedeme alikvotaci.
Sterilizujeme v autoklávu po dobu 15 minut při teplotě 121 °C.Pokud extrakt obsahuje vysoký podíl aromatických molekul, lze přidat siřičitan sodný s konečnou koncentrací 0,2 % jako antioxidant.
Desetinásobný roztok chloridu solného pufrovaný fosfátem (PBS), pH 7,4
| NaCl | 80 g |
| KH2PO4 | 2 g |
| Na2HPO4 x 12 H2O | 29 g |
| KCl | 2 g |
| destilovaná voda | 1 l |
Látky rozpustíme a změříme pH. Podle potřeby provedeme alikvotaci.
Sterilizujeme v autoklávu po dobu 15 minut při teplotě 121 °C.
Roztok chloridu sodného - Tween - pufrovaný fosforečnanem (PBS-T)
| 10 x PBS | 100 ml |
| 10% Tween 20 | 5 ml |
| destilovaná voda | 895 ml |
Blokační (antilátkový) pufr (musí být použit čerstvý)
| 10 x PBS | 10 ml |
| polyvinylpyrrolidon 44.000 MWT(PVP-44) | 2 g |
| 10% Tween 20 | 0,5 g |
| sušené mléko | 0,5 g |
| destilovaná voda | na 100 ml |
Alkalický substrátový roztok fosfatázy, pH 9,8
| dietanolamin | 97 ml |
| destilovaná voda | 88 ml |
Smícháme a koncentrovanou HCl ustálíme na pH 9,8.
Doplníme destilovanou vodou na objem 1 litru.
Přidáme 0,2 g MgCl2.
V každých 15 ml roztoku rozpustíme 2 tablety substrátové fosfatázy (5 mg) (Sigma).
Materiál pro PCR testDodatek 6
Sekvence oligonukleotidového primeru
| Primer OLI-1 | 5'- GGGGGTAGCTTGCTACCTGCC-3' |
| Primer Y-2 | 5'- CCCACTGCTGCCTCCCGTAGGAGT-3' |
potřebné chemikálie viz Seal et al., 1993.
Materiál pro test selektivních živných médií a obohacovací testyDodatek 7
Selektivní medium SMSA (Engelbrecht, 1994, modifikováno podle Elphingstona et al., 1996)
- Základní medium
Živná média pro izolaci a kultivaci původce hnědé hniloby Materiál pro přípravu vzorku Stanovení stupně kontaminace v IF testu Materiál pro ELISA test Materiál pro PCR test Materiál pro test selektivních živných médií a obohacovací testy kaseinový hydrolyzát (Difco) 1 g baktopepton (Difco) 10 g glycerol 5 ml agar (Difco) 15 g destilovaná voda 1 l V litrové baňce připravíme objem 0,5 l substrátu.
Látky rozpustíme a zkontrolujeme hodnotu pH. V případě potřeby před autoklávováním upravíme hodnotu pH na 6,5. Při pH nad 7,0 neroste původce hnědé hniloby na tomto substrátu dobře.
Sterilizujeme v autoklávu po dobu 15 minut při teplotě 121 °C.
Ochladíme na 50 °C.
Pro dosažení konečných koncentrací přidáme následující látky (všechny od firmy Sigma):
Živná média pro izolaci a kultivaci původce hnědé hniloby Materiál pro přípravu vzorku Stanovení stupně kontaminace v IF testu Materiál pro ELISA test Materiál pro PCR test Materiál pro test selektivních živných médií a obohacovací testy krystalová violeť 5 mg/l polymixin-B-sulfát 100 mg/l (cca 600 000 jednotek) Sigma P-1004 bacitracin (*) 25 mg/l (cca 1250 jednotek) Sigma B-0125 chloramfenikol 5 mg/l Sigma C-3175 penicilin-G 0,5 mg/l (cca 825 jednotek) Sigma P-3032 tetrazoliové soli 50 mg/l Látky rozpustíme v 70% etanolu na koncentrace uvedené pro objem připravovaného média. Některé látky, jako je např. polymixin B nebo chloramfenikol, je třeba přitom lehce zahřát a protřepat.
SMSA bujón (Elphinstone et al., 1996)
Příprava jako u selektivního substrátu SMSA, avšak bez agaru.
Naplníme alikvotní množství 3 ml do 30 ml jednorázových univerzálních zkumavek.
- (*) V případě potřeby lze kontaminaci saprofytickými bakteriemi snížit zvýšením koncentrace bacitracinu na 300 ppm, aniž by tím bylo negativně ovlivněno izolování původce hnědé hniloby
Literatura
Buddenhagen, I. W. - Sequeira, L. - Kelman, A.: Description of races in Pseudomonas solanacearum . Phytopathology 52 (1962):726.
Cook, D. - Elizabeth, B. - Sequeira, L.: Genetic diversity of Pseudomonas solanacearum: detection of restriction fragment length polymorphism with DNA probes that specify virulence and hypersensitive respons. Molecular Plant-Microbe Interactions 2 (1989): 113 - 121.
Dinesen, I. G. - DeBoer, S. H.: Extraction of Clavibacter michiganensis subsp. sepedonicus from composite samples of potato tubers. American Potato Journal 72 (1995): 133 - 142.
Elphinstone, J. G. et al.: Sensitivity of different methods for the detection of Pseudomonas solanacearum (Smith) Smith in potato tuber extracts. EPPO Bulletin 26 (1996).
Engelbrecht, M. C.: Modification of a semi-selective medium for the isolation and quantification of Pseudomonas solanacearum. ACIAR Bacterial Wilt Newsletter 10 (1994): 3 - 5.
Hayward, A.C.: Characteristics of Pseudomonas solanacearum. Journal of Applied Bacteriology 27 (1964): 265 -277.
Hayward, A.C.: Systematic and phylogeny of Pseudomonas solanacearum and related bacteria. In: Bacterial Wilt: the disease and its causative agent, Pseudomonas solanacearum (eds. A. C. Hayward and G. L. Hartman) CABI Oxford, 1994: 127 - 135.
Janse, J. D.: A detection method for Pseudomonas solanacearum in symptomless potato tubers and some data on its sensitivity and specificity. EPPO Bulletin 18 (1988): 343 - 351.
Janse, J. D.: Infra- and intraspecific classification of Pseudomonas solanacearum strains using whole cell fatty acid analysis. Systematic and Applied Microbiology 14 (1991): 335 - 345.
Kelman, A.: The relationship of pathogenicity in Pseudomonas solanacearum to colony appearance on a tetrazolium medium. Phytopathology 64 (1954): 293 - 295.
Lelliot, R. A. - Stead, D. E.: Methods for the diagnosis of bacterial diseases of plants. (T. F. Preece ed.) Blackwell Scientific Publications, Oxford 1987, 216 s.
Louws, F. J. et al.: Differentiation of genomic structure by rep-PCR fingerprinting to rapidly classify Xanthomonas campestris pv. vesicatoria. Phytopathology 85 (1995): 528 - 536.
Lozano, J. C. - Sequeira, L.: Differentiation of races of Pseudomonas solanacearum by a leaf infiltration technique. Phytopathology 60 (1970): 838
Mirza, M. S. et al.: Specific 16S ribosomal RNA targeted oligonucleotide probe against Clavibacter michiganensis subsp. sepedonicus. Canadian Journal of Microbiology 39 (1993): 1029 - 1034.
Robinson-Smith, A. et al.: Production of antibodies to Pseudomonas solanacearum, the causative agent of bacterial wilt. Food and Agricultural Immunology 7 (1995): 67 - 79.
Seal, S. E. et al.: Differentiation of Pseudomonas solanacearum, P. syzygii, P. picketti and the blood disease bacterium by partial 16S rRNA sequencing: construction of oligonucleotide primers for sensitive detection by polymerase chain reaction. Journal of General Microbiology 139 (1993): 1587 - 1594.
Smith, J. J. et al.: Genetic diversity of Burkholderia solanacearum (synonym Pseudomonas solanacearum) race 3 in Kenya. Applied and Environmental Microbiology 61 (1995): 4262 - 4268.
Stead, D. E.: Techniques for detecting and identifying plant pathogenic bacteria. In: Techniques for rapid detection of plant pathogens (eds. J. M. Duncan and L. Torrance). Blackwell Scientific Publications, Oxford 1992a, s. 76 - 111.
Stead, D. E.: Grouping of plant pathogenic and some other Pseudomonas spp. using cellular fatty acid profiles. International Journal of Systematic Bacteriology 42 (1992b): 281 - 295.
Van Beuningen, A. - Derks, H. - Janse, J. D.: Detection and identification of Clavibacter michiganensis subsp. sepedonicus with special attention to fluorescent in-situ hybridisation (FISH) using a 16S rRNA targeted oligonucleotide probe. Züchtungsforschung 2 (1).
Následující stránka